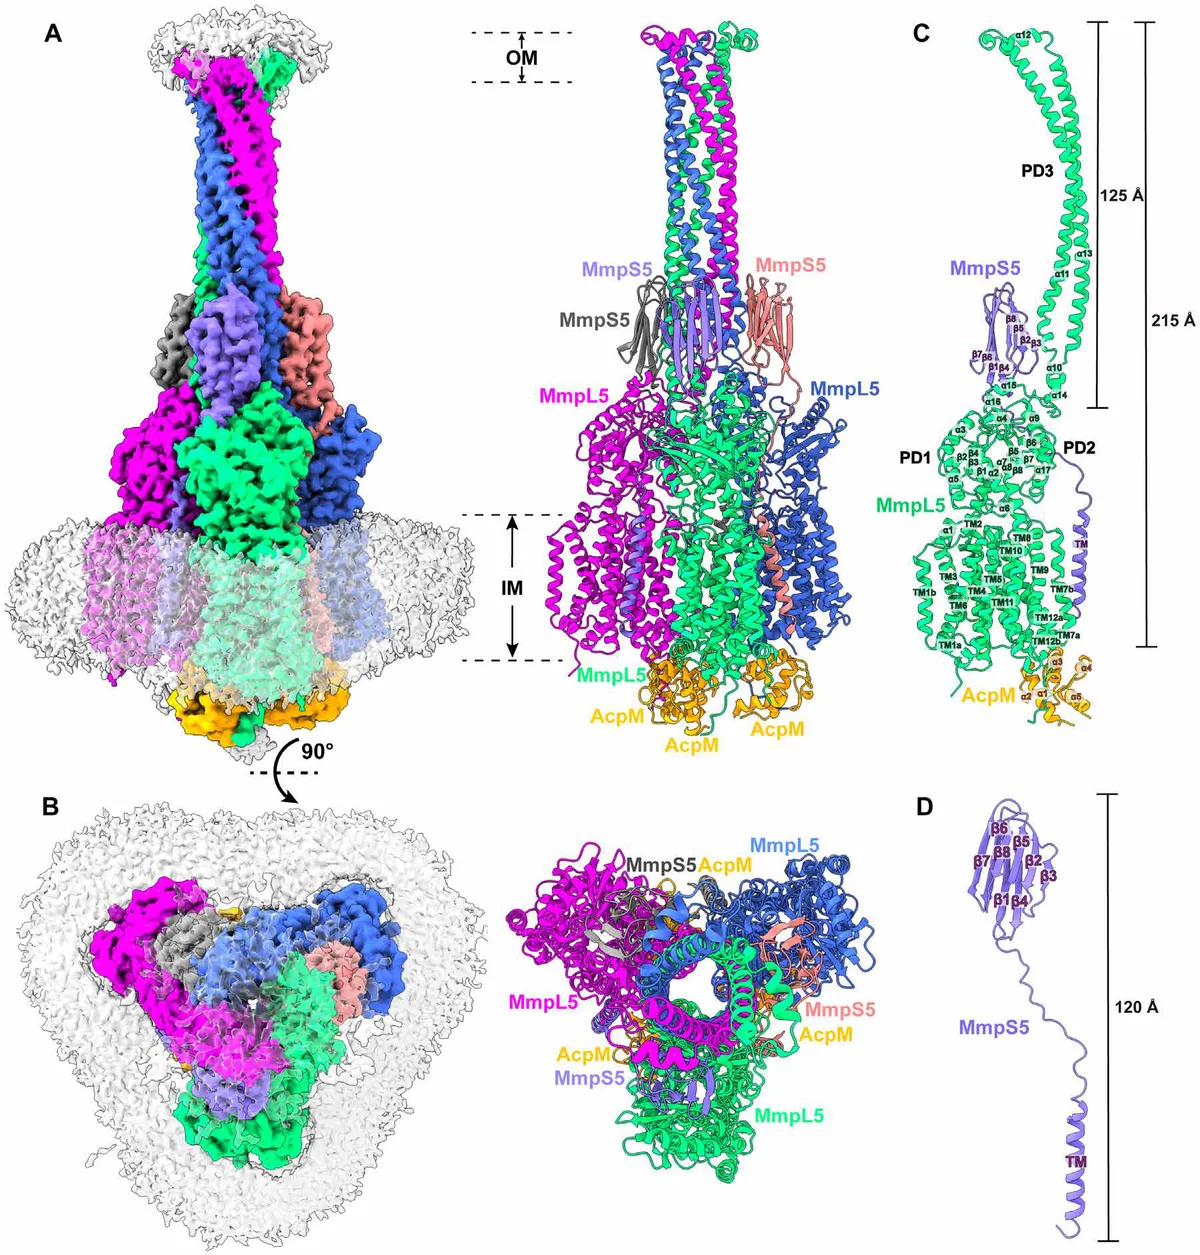
一句话点评:同组在 MMBR 综述之前的原始研究:从粗膜样本中一次性解析出 AcpM–MmpL5 二维阵列、AcpM–MmpL5–MmpS5 三聚体(3:3:3)与 AcpM–MmpL5 三聚体三套结构,回答了 MmpL5 的寡聚状态问题,并揭示"针状"跨膜转运机制。
精读笔记
本文为开放获取(OA,CC BY)文献,PDF 可在本页直接下载;以下为我的阅读整理。
研究问题
- MmpL 家族(尤其 MmpL5)在体内到底是单体还是三聚体长期有争议:纯化后多为单体,但功能与单分子成像提示可能存在寡聚组装。
- MmpS5 接头蛋白的作用、以及 MmpL5 如何跨越结核分枝杆菌厚重的细胞被膜(inner membrane + 周质 + 外膜 mycomembrane),机制均不清楚。
方法亮点
- 在 M. smegmatis mc²155 中共表达 MmpS5(MSMEG_1381)与 MmpL5(MSMEG_1382)。
- 不做彻底纯化:直接取粗膜,蔗糖垫离心富集膜蛋白,去垢剂胶束增溶后直接上电镜——避免纯化步骤丢掉结合较弱的复合物。
- 单颗粒冷冻电镜 + “Build and Retrieve”(BaR) 方法:在同一份样本中把共存的多种颗粒分类并逐一解析。
主要发现
- AcpM–MmpL5 单体 → 二维阵列:单体复合物在膜上自发排列成规则的 2D arrays,提示单体态可沿膜平面侧向扩散、便于寻找伙伴蛋白。
- AcpM–MmpL5–MmpS5 三聚体(3:3:3):MmpL5 以同源三聚体存在,三个 MmpS5 分子把三个 protomer “扣”在一起;三个 PD3 亚域通过 coiled-coil 形成长约 125 Å、宽约 40 Å 的针状中央通道,三聚体纵向尺寸约 215 Å,足以贯穿整个细胞被膜。
- AcpM–MmpL5 三聚体是中间态:缺少 MmpS5 时 PD3 上半部分结构不可追踪,说明 MmpS5 是稳定 PD3 折叠的必要条件。
- 首次看到全长 MmpS5 结构:N 端单次跨膜螺旋 + 由 8 条 β 链组成的周质域(MmpS 家族迄今最完整的结构信息)。
- 通道的限制位点由 M615、F619 等疏水残基围成;整体提出”组装—转运—解聚”的循环模型:单体以二维阵列扩散 → 遇 MmpS5 组装为三聚体针状通道 → 完成转运后逐步解聚回单体。
意义
- 用同一套数据里的多种状态回应了”单体 vs 三聚体”的争论:最稳定的形式是单体,而三聚体是依赖 MmpS5 组装出的”跨被膜注射器”。
- MmpL5–MmpS5 与药物外排(贝达喹啉、德拉马尼耐药)和铁载体(mycobactin)分泌都相关,PD3 通道与限制位点为抑制剂设计提供了新的结构靶点。
我的感想(也是那条”遗憾”动态的由来)
- 这就是让我遗憾的那份工作:样本策略聪明(粗膜里”顺手”捞出三套复合物)、结构数据扎实、机制讲成闭环,读起来非常痛快。
- 学到两点:① 不要迷信”纯化到位”,有时保留原始膜环境反而能看到更真实的组装状态;② 把结构证据讲成一个自洽的机制故事,和做出结构本身同样重要——这正是我还需要练习的能力。