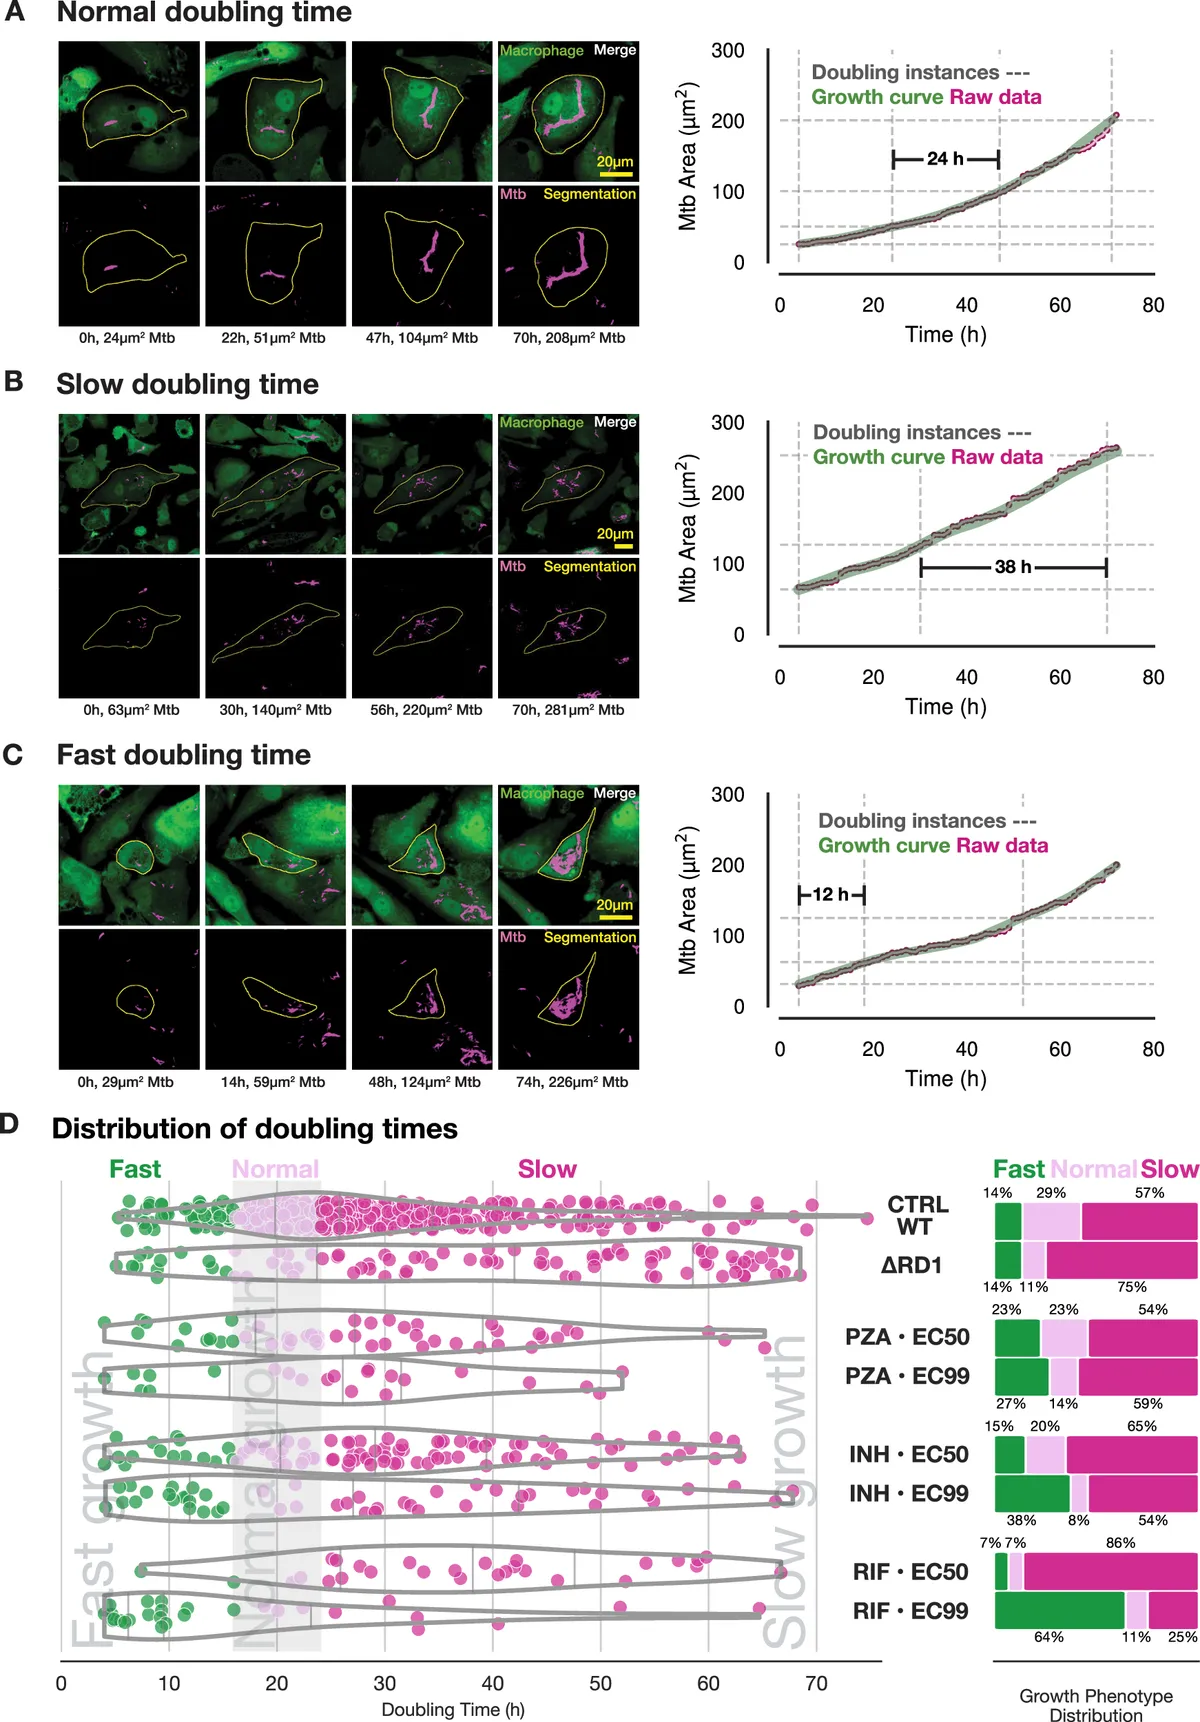
一句话点评:用 75 h 活细胞成像追踪单个巨噬细胞内 Mtb 的负荷轨迹,从 10,371 个被感染细胞中筛出 590 个「真胞内倍增」事件:倍增时间从 <10 h 到 >70 h,14% 属于 <16 h 的快速生长表型,且这一表型是暂时、可逆的;EC99 抗生素下存活的菌反而富集快速生长亚群,小鼠肺内 CFU 与复制活性正相关(r = 0.71–0.86)。
精读笔记
本文为开放获取文献(CC BY 4.0),PDF 可在本页下载;以下为我的阅读整理。
研究问题
- 传统上把”耐药”当作菌群中一个固定亚群的属性,但越来越多的证据指向表型异质性:同一遗传背景的菌,个体间生长速率差别巨大。
- 教科书式的 Mtb 倍增时间是 20–25 h(来自 bulk 培养/群体平均),可是单个宿主细胞内部的复制到底有多快、有多不均一、这种不均一与抗生素存活有没有关系,此前缺少高时空分辨率的直接测量。
- 本文要回答:① 单个人巨噬细胞内的 Mtb 复制速率分布是什么样;② 这些速率是稳定状态还是暂时事件;③ 快速生长的菌是否更能在抗生素下存活(体外 + 体内)。
实验体系与关键设计
- 体系:iPSC 来源的人巨噬细胞(iPSDM,EGFP 标记细胞质)感染 Mtb H37Rv WT 表达 E2-Crimson;9 图拼接 + 10% 重叠、2 个荧光通道 × 3 个 z 层(步长 2 μm),采集 75 h,30/60 min 一帧(Fig. 1A–E)。
- 量化:用 EGFP 通道分割细胞体积 → 得到每个巨噬细胞的胞内 Mtb 负荷随时间的轨迹 → 对轨迹拟合 LOWESS 平滑曲线(抑制高频噪声、保留生长趋势,statsmodels 实现)→ 从平滑曲线上提取倍增点与倍增时间。
- 最重要的一步:区分 intrinsic / extrinsic growth。原始信号与 LOWESS 曲线的 R² < 0.7 提示”跳变”,作者用人类判读(napari 自定义快捷键逐条浏览单细胞视频)把两类现象归为 extrinsic:胞外摄取(extracellular uptake)与胞间转移(intercellular transfer,多为巨噬细胞死亡后菌被邻近细胞吞入)。理由很充分——这两者都会让胞内负荷”瞬间增加”,如果直接套生长曲线就会算出一个假的极短倍增时间。
- 样本漏斗(图 S1D,数字已对照补充材料核对):共追踪 Ncell = 18,152 个巨噬细胞;42.9%(7,781)始终未见感染、19.7%(3,574)被感染但无可测生长、27.9%(5,065)只有不足以完成一次群体倍增的微弱生长、9.5%(1,732)出现胞内群体倍增。而这 1,732 次倍增里只有 34.1%(590) 归因于真正的胞内生长,其余分别是胞间转移 28.1%、胞外摄取 35.3%、无法判定 2.6%。也就是说,从近两万个被追踪细胞中,最终只有 590 个”最容许的宿主”进入了速率分析。
主要结果
- 倍增时间跨度极大:整体分布从 <10 h 到 >70 h。未处理 WT 的中位数 25 h(Ncell = 245,Ndt = 402,CV = 0.45),与文献一致;但其中 14% 属于 <16 h 的”快速”表型,另有 57% 为 ≥24 h 的”慢速”事件。
- 分布是双峰而非单峰:GMM 支持 2 组分(ΔBIC > 10),一个”活跃复制”峰在 ~20 h、一个慢速峰在 ~45 h(作者自己在图 S3 图注里也承认:2 组分并不排除”重尾单峰分布”这一竞争解释)。
- 表型是暂时、可逆的(facultative and transient):同一巨噬细胞在 75 h 内可以先后表现几种不同的倍增时间,所以作者刻意区分 Ncell(宿主细胞数)与 Ndt(实测倍增次数);快速生长是一个”测到的事件”,而不是一个持续维持的状态。
- 不依赖 ESX-1:减毒株 ΔRD1 的倍增中位数升到 42 h、可测事件大幅减少,但快速生长比例仍有 11%,与 WT 统计上不可区分(Fisher 精确检验 p > 0.99);同时胞间转移比例从 30.2% 降到 18.5%。
- 抗生素下”快菌”反而富集:PZA/INH/RIF 都随浓度降低可测倍增事件数,但 EC99 处理后仍留存的高 G/R(Mtb-Timer 报告基因,绿/红比作为复制活性代理)亚群比例升高;在 EC99 条件下 2,859 个非倍增 + 2,175 个不生长细胞对比仅 246 个仍有胞内倍增(图 S1G)。
- 体内验证(C3HeB/FeJ 小鼠,气溶胶感染 Mtb-Timer,56 dpi 后给药 3 周):存活菌的复制活性与载体组相当(RIF,p = 0.97)甚至更高(PZA,p < 0.05);肺 CFU 与平均 G/R 比正相关(Vehicle r = 0.74,p = 0.023;RIF r = 0.86,p = 0.003;PZA r = 0.71,p = 0.034;n = 9 只/组,Pearson)。
关于”初始负荷与倍增时间无关”——我的理解
论文里有一句很容易被误读的结论:“Initial bacterial burden showed no correlation with subsequent bacterial doubling times within individual macrophages (Figure S2A)。”
先把这句话说准(我下载了 16.9 MB 的补充材料,核对了 Figure S2 的原始图注):所谓”初始负荷”的操作定义是追踪最初 5 小时内细菌面积的平均值(μm²,即用荧光面积当负荷代理);分析方式是对每个条件(WT 对照、WT + 各抗生素、ΔRD1)单独做倍增时间 ~ 初始负荷的线性回归,报告 R² 与 p 值,作者以”R² 一致地低”为依据,得出”胞内生长速率与巨噬细胞内初始菌量无关”的结论。
有人会直觉认为这不合理:初始负荷越大,菌群应该越早离开指数期、进入平台期,倍增时间总该受影响。但这两个说法其实谈的不是同一个量:
- 指数生长写成 N(t) = N₀·2^(t/Td):N₀ 是截距,Td 是斜率。只要观测窗口内还是纯指数,两者在数学上就彼此独立;N₀ 与 Td 出现相关,恰恰是”已经偏离指数生长”(密度依赖、资源限制)的证据。所以”无相关”在这里是一个一致性检验的零结果,而非”初始负荷不重要”的生物学断言。
- “更早进入平台期”约束的是墙钟时间和固定窗口内的累计倍增次数,不是指数段内的 Td。而且单细胞内的”平台”未必由营养耗竭这一固定容量决定,更可能由宿主细胞状态(吞噬体成熟、铁限制、宿主细胞死亡)设定。
- 更关键的是截断(censoring):因细胞死亡/胞间转移造成负荷跳变的轨迹被判为 extrinsic 而剔除,而没有倍增或仅微弱生长的细胞(各条件下的数千个)根本不进入倍增时间统计。细胞死亡恰恰更容易发生在高负荷细胞里,于是高负荷端被系统性地移出数据集,变量范围收窄,任何真实存在的弱密度效应都会被衰减到测不出。作者也明确承认”没有细胞死亡标记,无法定量这一效应”。
- 作者的 4 个正当理由之一本身也是承认截断:非倍增/无生长群体”无法确定是真的停滞,还是受 75 h 采集窗口限制”。
- 统计口径上的两点保留:① 用”R² 低”论证”无关系”并不等价于斜率不显著——R² 只反映解释方差的比例,一个显著但很弱的关系同样会给出很低的 R²,判断”无关”该看斜率、p 值与效应量的置信区间;② 按条件分组的普通最小二乘回归把同一宿主细胞内先后测到的多个倍增事件当成独立观测点,未做混合效应模型或按细胞聚类,模型设定与数据的层级结构不匹配。
- 图 S2A 用的是线性回归而非 log 尺度的指数模型;而且”初始负荷”以感染早期 5 h 的细菌面积表示,单个巨噬细胞在这个时间窗内容纳的菌量差异本身就有限——范围受限(range restriction)会系统性衰减相关系数。
- 有意思的是体内数据方向相反:肺 CFU 与复制活性是正相关(r = 0.71–0.86),即组织层面”负荷越重、复制越活跃”——提示重负荷病灶是更”容许”的微环境(或复制本身在推高负荷),而不是资源耗竭导致的密度限制。但这只是跨小鼠的相关、n 小,不能推因果。
我的评价与保留
- 亮点:把”耐受”从固定亚群改写为暂时性事件,并用时间分辨率把它测出来;把 extrinsic growth(摄取 / 胞间转移)单独剥离,避开了”巨噬细胞死亡造成的信号跳变被误读成快速生长”这个该领域常见的坑;体外单细胞 + Mtb-Timer 报告基因 + 体内小鼠三层证据链互相支撑,并且如实报告了 GMM、KS、Fisher 检验与 FDR 校正。
- 需留意:① 2,859 + 2,175 个非倍增/不生长细胞被排除在倍增时间分析之外,且细胞死亡无法标记——“高负荷端截断”是我认为对”初始负荷无关”这一结论最有力的质疑;② Timer 的 G/R 比与倍增时间之间的定量关系尚未建立(作者原话:a quantitative link between the phenomena reported in Figs. 2 and 3 remains to be established),因此图 2 的体外分布与图 4 的体内 G/R 比不能直接换算;③ 体内相关是跨小鼠的 Pearson 相关(n = 9/组,来自两次独立实验 4 + 5),相关不等于因果,“复制活跃导致治疗失败”仍是关联性结论;④ ΔRD1 的”快速生长比例与 WT 不可区分(p > 0.99)“更可能是功效不足(该组仅 Ncell = 83、Ndt = 87)而非真正的生物学等价;⑤ 缺少直接的密度/资源限制测量,也没有对高负荷轨迹做剔除前后的敏感性分析;⑥ 图 S2A 以”R² 低”论证”初始负荷无关”,且未按宿主细胞做层级建模(详见上一节)。
- 方法论层面的启发:单细胞轨迹数据里,“信号跳变”既是噪声也是生物学(细胞死亡、胞间转移);用 R² 做排序 + 人工判读,把两者分开,这个思路可以迁移到任何长时间活细胞追踪的分析里——但剔除规则本身会引入选择偏倚,必须在报告里交代清楚剔除了什么。
与我方向的关系
- 我关心的是分枝杆菌耐药性,尤其是耐受(tolerance)与持留(persistence)的表型机制:这篇论文支持”耐药表型是动态状态而非固定亚群”,和我此前读的 KatG/catalase 缺陷—贝达喹啉附带敏感性(代谢脆弱性)那条线可以接起来:代谢活跃 / 复制快的菌在某些药物下反而更脆弱,在 INH 这类作用于复制过程的药下却可能因为”生长速度超过抑制速度”而逃逸。
- 可延伸的问题:① 快速生长表型是否与特定代谢状态(如脂质代谢、ATP 水平)耦联、能否用代谢报告基因在单细胞层面同时测?② 高负荷巨噬细胞(是否)更倾向于出现 extrinsic growth,需要一个细胞死亡标记来定量——这是本文留下的最明显的缺口;③ 单细胞内”平台期”由什么设定(营养、铁、宿主细胞死亡)目前是黑箱。